感官生物学 · 传粉生态学
每一朵花都带电,每一只蜜蜂都能感知这种电——这不是科幻,是过去十年感官生物学最惊人的发现之一。
“感官生物学”(sensory biology)在过去二十年里持续刷新人类对动物感知世界方式的认知。2013 年,英国布里斯托大学的 Sutton、Clarke 等人在《Science》发表的研究首次实验证明:熊蜂能够感知花朵周围的微弱静电场,并利用这一信息判断哪朵花已经被访问过、哪朵还有花蜜。这一发现开启了”电场感知”(electroreception)作为一种全新的传粉信号通道的研究领域,颠覆了传粉生态学几十年建立的”视觉+嗅觉双通道”框架。热带雨林作为全球传粉网络最复杂的生态系统之一,其中的蜜蜂类群(包括真社会性蜜蜂、独居蜜蜂、无刺蜂等多个类群)与开花植物之间的关系,是研究传粉网络精密结构的关键窗口。理解雨林蜜蜂,就是理解一个我们平时几乎察觉不到的电学-化学-视觉的多通道传粉网络。
物理基础
为什么每一朵花都带电,每一只蜜蜂都会感知它
植物和大气之间存在天然的电势差。由于全球大气电学循环(atmospheric electric circuit)的存在,晴天时地面相对于高空带负电,形成从地面向高空延伸的静电场(近地面强度约 100 V/m)。植物作为从地面向上生长的导体结构,成为这个电场的一部分——花朵尖端往往集中较强的正电势差异。
而蜜蜂在飞行过程中,通过与空气摩擦,全身会带上正电荷(一只飞行中的熊蜂身上的静电荷可达 30-50 pC 数量级)。当带正电的蜜蜂接近带负电的花朵时,两者之间形成微弱的静电吸引——甚至可以让花粉从花朵上主动”跳”到蜜蜂身上,无需机械接触。
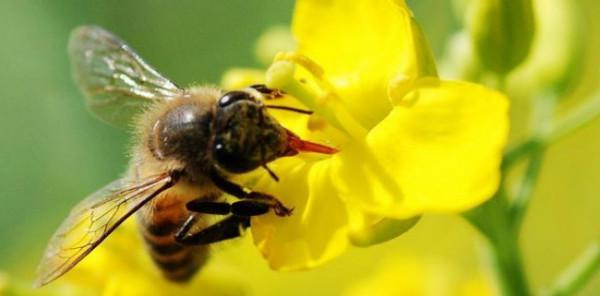
这里就是 2013 年 Sutton 等人研究的关键发现之一:蜜蜂不仅能”利用”这个电场(通过静电吸引沾附花粉),还能”感知”这个电场——即当一朵花被上一只蜜蜂访问过后,其电势会短暂改变(因为蜜蜂身上的正电荷会中和花朵的负电势),后来的蜜蜂能感知到这种电势变化,从而判断这朵花是否新鲜。这就避免了它们浪费时间在已经被采过花蜜的花上。
蜜蜂感知电场的具体机制主要通过身体上的机械感觉毛(mechanosensory hairs)——当电场存在时,这些微小的毛会因静电作用发生极其细微的偏折,蜜蜂的神经系统能感知这种偏折。这一机制类似于早已知的鱼类电场感知,但独立演化,被认为是感官生物学近二十年最重要的发现之一。
传粉网络
热带雨林蜜蜂:多样、精密、生态位分化极致
热带雨林是全球蜜蜂多样性最高的生态系统之一。全球已知的蜜蜂物种超过 2 万种,其中大部分是独居蜜蜂(solitary bees),只有很小比例是我们熟悉的真社会性蜜蜂(如西方蜜蜂、无刺蜂)。热带雨林的蜜蜂群落展现出极致的生态位分化——不同蜜蜂物种在体型、访花偏好、活动时段、觅食行为上高度分化。
无刺蜂(Meliponini)是热带地区极具代表性的真社会性蜜蜂类群。体型多在 2-15 毫米之间(远小于普通蜜蜂),失去了螫针功能但演化出了极复杂的化学防御与巢结构。全球无刺蜂物种超过 500 种,主要分布在热带地区。在西双版纳与东南亚热带雨林中,多种无刺蜂承担着大量小型热带植物的传粉工作。
大型木蜂(Xylocopa spp.)是雨林中最显眼的蜜蜂之一。体长可达 20-30 毫米,能在坚硬的木质材料中钻洞筑巢。由于体型大、飞行力强,木蜂承担了一些体型较大或花冠深长的雨林植物的传粉——包括一些其他蜜蜂无法有效访问的花。
兰花蜂(Euglossini)是热带美洲特有的著名类群,但在东南亚与非洲雨林中,与其功能相似的类群同样存在。它们与许多兰科植物形成了高度专一的传粉关系——一些兰花只被特定几种蜜蜂访问,这种”一对一”的传粉共生是热带雨林最精密的生态关系之一。
各类独居蜜蜂在物种数上占据绝对多数,但因为体型小、行为隐秘,公众关注度低。但它们承担的传粉工作可能超过所有真社会性蜜蜂的总和——这是近年传粉生态学越来越强调的一个观点:不能把”传粉”简单等同于”蜜蜂 = 家养蜜蜂”。
网络结构
为什么”传粉网络”是理解雨林的关键结构之一
过去二十年,”传粉网络”(pollination network)成为群落生态学最重要的研究框架之一。其核心是把”哪种蜜蜂访问哪种植物”用网络图的形式定量化——每种蜜蜂是一个节点,每种植物是一个节点,两者之间的连接强度反映访问频率。
热带雨林的传粉网络展现出几个共通的结构特征:第一,「巢式结构」(nestedness)——广谱种(访问多种植物的蜜蜂)与专一种(只访问少数植物的蜜蜂)在同一网络中共存,专一种往往访问广谱种也访问的植物,形成层层嵌套的结构。这一结构增加了网络的稳定性——即使一些专一种消失,广谱种仍然维持基本传粉功能。
第二,「模块化」(modularity)——网络内部形成多个相对独立的”子模块”,每个模块内的物种相互访问强度高,模块之间的连接较弱。这一结构反映了”传粉综合征”(pollination syndromes)——不同蜜蜂类群倾向于访问符合其体型、行为偏好的植物类群。
第三,「关键物种」(keystone species)——一些蜜蜂物种在网络中承担不成比例的重要连接。它们的消失可能引发连锁反应,让多个植物失去主要传粉者。这一发现让”哪些蜜蜂最重要”成为保护生物学的核心问题。
据太阳鸟团队在西双版纳的长期观察记录,本地雨林中的传粉网络展现出典型的热带雨林特征——大量小型蜜蜂在低层灌木与草本层活跃、大型木蜂在中层树冠传粉、多种无刺蜂在特定花期高强度访问几种关键植物。理解这个精密网络,就是理解一个平时完全不可见的生态基础设施。
全球意义
为什么”蜜蜂衰退”是当代生物多样性危机的核心议题
过去十几年,”蜜蜂衰退”(bee decline)成为全球关注的环境议题。核心原因是:全球多个地区的蜜蜂种群(包括家养蜂群与野生蜜蜂)都出现了显著数量下降,主要驱动因素包括新烟碱类农药、栖息地丧失、病原体传播、气候变化、以及这些因素的协同作用。
蜜蜂衰退的意义远远超过”少了一种昆虫”——它意味着传粉网络的整体功能可能受损。全球约 87.5% 的野生开花植物、以及全球主要粮食作物的相当一部分都依赖动物传粉,其中蜜蜂是最重要的传粉类群之一。传粉网络一旦出现结构性退化,其后果不仅是”某些花授不了粉”,而是整个开花植物群落的繁殖成功率下降,进而影响果实、种子、以及依赖果实种子生活的其他动物类群。
而热带雨林的传粉网络具有独特的脆弱性——它比温带传粉网络更”专一化”、蜜蜂物种与植物物种的匹配更紧密,一旦关键物种消失就可能引发不成比例的连锁反应。这也是为什么热带雨林蜜蜂的保护,是全球生物多样性保护的一个关键前沿。
常见问题
关于雨林蜜蜂,人们最常问的
蜜蜂真的能”看到”电场吗?
用”看到”是一种类比。更精确的说法是:蜜蜂能通过身体感觉毛感知电场引起的微小机械偏折,这一感觉通道与视觉、嗅觉一样是独立的信息来源。它可能不是画面式的”看见”,而更接近于我们通过皮肤感知微风的方式——一种全身分布式的物理感觉。2013 年 Sutton 等人的《Science》论文是这一机制的首次实验证明,此后多个研究团队进一步阐明了神经生理与生态功能层面的细节。
“蜜蜂”这个词其实指的是什么?
科学定义上,”蜜蜂”指的是膜翅目蜜蜂总科(Apoidea)中的所有物种——全球已知超过 2 万种。大多数人熟悉的”蜜蜂”其实特指西方蜜蜂(Apis mellifera)——一种被人类驯化用于养蜂产蜜的真社会性蜜蜂。但西方蜜蜂只是蜜蜂总科的极小一部分。绝大多数蜜蜂是独居蜜蜂(solitary bees),一只雌蜂独自筑巢、产卵、觅食,不产蜜、不螫人、体型多在 5-15 毫米之间——它们是野生传粉的主力军,却常常被公众忽略。
无刺蜂真的没有螫针吗?
是的,无刺蜂(Meliponini)的螫针在演化过程中已经完全退化,成为它们最独特的解剖特征之一。但”无刺”不等于”无防御”——它们演化出了复杂的化学防御(部分种类会分泌刺激性化合物)、集群骚扰行为(大量个体围攻入侵者)、以及极巧妙的巢门防御结构。这一”从螫针防御到化学与行为防御”的演化转变,是社会性昆虫适应热带环境的经典案例之一。无刺蜂的蜂蜜在多个热带国家有传统利用历史。
兰花与蜜蜂的”一对一”传粉关系是怎么形成的?
这是长期共同演化(coevolution)的结果。当一种兰花演化出只有特定蜜蜂能触发的开花结构或化学信号,而这种蜜蜂又演化出了识别与利用这种花的能力,两者就形成了紧密的传粉共生。热带雨林中一些兰科植物与传粉者之间的匹配精密到只有一种蜜蜂能有效传粉。这种极端专一化在生态学上既是生物多样性最壮观的表现之一,也是最脆弱的关系之一——任何一方消失,另一方也可能连锁灭绝。
游客在雨林里能观察到不同类型的蜜蜂吗?
可以,只要在开花季节耐心观察合适的花朵。观察要领:找到正在盛花期的植物(雨林里几乎全年都有不同植物开花,但特定花期是观察高峰);静止观察 15-30 分钟;注意大小差异(从 2 毫米的小型无刺蜂到 30 毫米的大型木蜂)、行为差异(一些蜜蜂”忙碌快速”、一些”从容悠闲”)、访花偏好差异。有专业向导带领会显著提高识别效率——识别热带蜜蜂比识别鸟类更需要经验。
蜜蜂衰退是不是被夸大了?
不是。过去二十年多个大规模科学研究(包括跨国、跨大陆的长期监测)都记录到全球多个地区蜜蜂种群(包括家养与野生)的显著衰退。虽然衰退的严重程度因地区、物种、栖息地类型而有差异,但整体趋势是明确且被科学界广泛认可的。主要驱动因素也已被多学科研究交叉验证——包括新烟碱类农药、栖息地丧失、病原体、气候变化。这一议题不是环保夸张,而是全球生态危机中被记录得最充分的一个案例。
官网:sunbirddiscovery.com