看花被的”腿”和唇瓣的”钳”
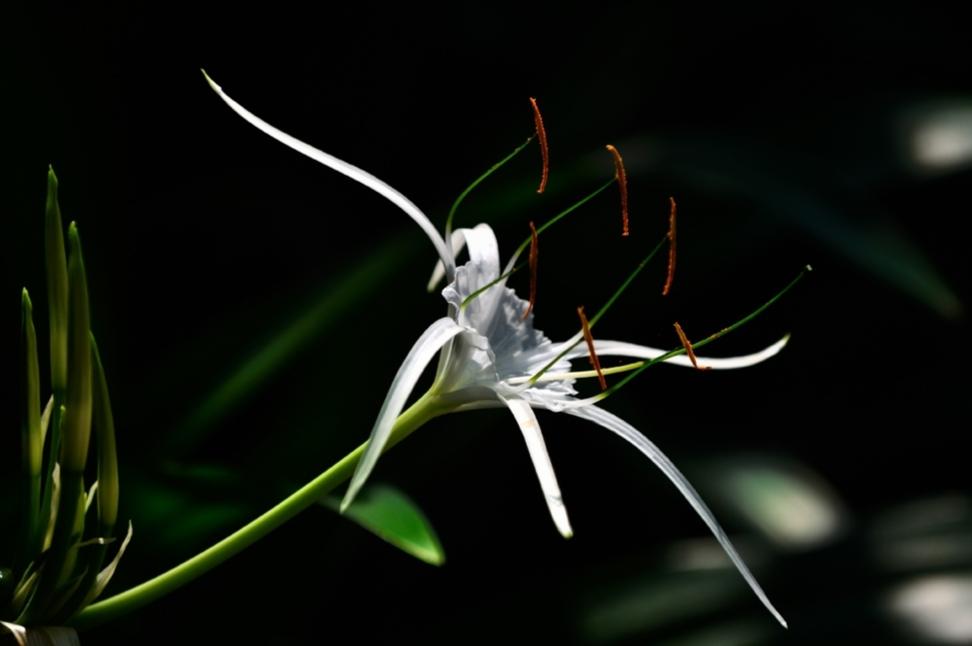
蜘蛛兰属(Scorpion Orchid,Arachnis spp.)的名字来自花的轮廓。花被六片——三枚萼片、三枚花瓣中有两枚侧瓣加一枚唇瓣——它的萼片与侧瓣都长而窄,向外伸展,形成”八条腿”的轮廓,中央短小的唇瓣常呈弯钩状,像蝎子的尾钳。这个外形在西双版纳的附生兰里极其独特。
花色与斑纹是最快的识别点:黄绿色或淡褐绿底色上,斜向泼洒着紫褐色的不规则条纹或斑块,这种”底色+泼墨”的配色在传粉者眼中模拟的是腐烂或发酵表面的视觉信号。花被的比例是第二个:萼片与侧瓣宽度不超过长度的五分之一,末端常微卷,这是”蜘蛛腿”效果的关键;唇瓣相对小很多,仅有花被长度的三分之一左右。气味是第三个常被忽视的识别信号:多数种类花朵在白天散发出淡淡的发酵气味——不浓,但贴近嗅一下能分辨,这是传粉者定位它的化学信号。
蜘蛛兰属 vs 万代兰属(Vanda):两者同属万代兰族,营养器官(单茎、带状肉质叶、气生根)极为相似,未开花时几乎不能区分;花期一到即可确认:万代兰花被较宽、呈近圆形,无”蜘蛛腿”效果;蜘蛛兰花被窄长、强烈伸展。蜘蛛兰属 vs 瘤瓣兰属(Esmeralda):瘤瓣兰花更大、唇瓣有明显的瘤状突起,整体花色偏红褐,蜘蛛兰唇瓣光滑无瘤,花色偏黄绿。
一场视觉与气味的双重欺骗
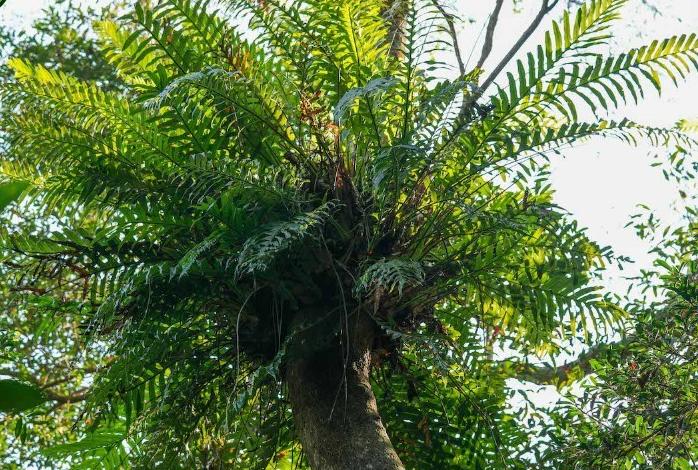
蜘蛛兰属全部是附生植物,固着在热带雨林冠层或大树的粗枝上,靠气生根从空气、雨水和树皮缝隙的腐殖质中获取水分和养分。它们不与宿主争夺根际土壤,只是借位置——这是热带附生植物共同的生态位策略。在冠层附生植物群落中,蜘蛛兰属与万代兰、石斛兰、鹿角蕨、鸟巢蕨同层共存,共同构成西双版纳雨林垂直分层中最繁盛的”空中花园”。
兰科约有三分之一的种类采用”欺骗性传粉”——花不提供花蜜或花粉作为回报,只用视觉或嗅觉信号模拟传粉者感兴趣的目标,把它们骗来完成授粉。蜘蛛兰属多数种类采用的是食源性欺骗:花色与斑纹模拟腐烂水果或发酵基质的表面,加上淡淡的发酵气味,把寻找发酵食物的果蝇、金龟甲、无针蜂一类传粉者吸引过来。昆虫落在唇瓣上寻找食物,触碰花柱的那一刻,黏性的花粉团被精准地粘到它的头部或背部,等它离开去下一朵花寻找”食物”,花粉就被带走了。
这种策略的代价是传粉效率低——一朵花往往需要吸引几十只上当的昆虫才有一只成功授粉;但代价之外的收益是花朵不必分泌昂贵的花蜜,节省了大量能量投入。在冠层这种水分和养分都稀缺的位置,这是一笔划算的交易。
兰花花形的仿生学意义集中在”用形态和化学共同触发特定行为”这一点上。2017 年,英国 Reading 大学 Lars Chittka 团队在《Current Biology》发表的研究指出,蜘蛛兰及其亲缘属的斑纹反射光谱恰好落在双翅目昆虫(果蝇、食蚜蝇)视觉峰值敏感的区段,与腐烂水果的反射光谱高度重合,是”视觉拟态”的典型案例;这类研究为仿生农业诱捕器(以视觉+化学信号诱捕特定害虫)的设计提供了参考。
一粒种子像一粒尘土,但得有真菌等它
兰花种子是植物界最小的——单粒重量仅微克级,一个蒴果可含数万至数百万粒种子。它们之所以能这么小,是因为种子里几乎不储存任何营养——没有胚乳,只有一个由少数细胞组成的胚。种子落到合适的树皮或岩面上后,必须在数日内遇到特定的真菌,与之建立共生关系——真菌为幼胚提供碳水化合物与矿质养分,幼胚才能萌发并逐步长出气生根与叶。没有合适的真菌,千万粒种子里一粒也活不下来。
这意味着蜘蛛兰属以及几乎所有兰科植物的保护问题,从来不是单一物种的问题,而是植物—真菌—传粉者三方共存的问题。移植一棵成年兰花很容易,但在没有相应真菌与传粉者的环境里,它只能活一代。这也是野外采挖兰花在生态学上的根本错误:你搬走的不是一棵植物,而是一整套三方关系的终端。
在冠层上开花的,与地上的花不是同一回事
傣语里对附生在大树上的兰花、蕨、天南星类附生植物有一个统称——”糯哄”(no hong),字面意为”树上的花类”。这个命名方式反映了一种生态分类的直觉:对世居民族而言,地上的花和树上的花是两类不同的东西,前者是地里长的,后者是”借树住”的。这与现代植物学把”附生植物”作为一个独立的功能类群看待高度一致。
据傣族传统记录,附生兰在传统日常生活中并非主要利用对象——它们位于高大乔木的冠层,不易采集,也无特殊的食用或药用价值;真正进入日常使用的兰科植物是林下地生的石斛类(如石斛Dendrobium的茎)与白及(Bletilla striata)。但在仪式与审美层面,附生兰花期的开放,特别是雨季前后在高树上一簇簇绽放,被视为雨林丰饶的象征。多位基诺族老人提到,过去在深山里走路,看到大树上附生兰盛开被认为是好兆头,”这棵树还是活的,鸟还在飞”。
一个重要的现实必须写清楚:兰科所有种在中国已列入《国家重点保护野生植物名录》,蜘蛛兰属在《濒危野生动植物种国际贸易公约》(CITES)附录 II 中——全属所有种类的国际贸易均受管制。野外采挖、运输、交易蜘蛛兰属任何种类的个体均属违法。本图鉴不记录任何涉及蜘蛛兰野外采集与利用的具体信息。
据太阳鸟团队田野调查,在西双版纳的村寨走访中,中老年受访者普遍能回忆起”小时候山上到处是野兰”的场景,而近二三十年野生兰花的目击频率在走访样本中明显下降;多位受访者提到的减少原因主要是采挖和栖息地破坏——附生兰依赖的大径级宿主树被砍伐,整个微生境即消失。
一个属,支撑了全球兰花育种产业的一半
蜘蛛兰属分布于东南亚、南亚部分地区及新几内亚,中心在马来群岛——马来西亚、印度尼西亚、菲律宾、新几内亚是其多样性最高的区域。中国分布的种类集中在云南南部与海南,西双版纳位于其分布的北缘。
在全球兰花育种史上,蜘蛛兰属是最重要的母本属之一。它与万代兰属(Vanda)、鸟舌兰属(Ascocentrum)等万代兰族成员之间的属间杂交,产生了庞大的切花兰花商品体系——新加坡自 1960 年代以来成为全球主要的切花兰花出口国,其品牌支柱 Vanda ‘Miss Joaquim'(新加坡国花)就是蜘蛛兰属与万代兰属的杂交后代。花形窄长、花色斑驳的”蜘蛛兰风格”至今是切花兰花最高价的几个花型之一。
跨文化的一致出现在”把兰花看作稀罕”这件事上。中国古代的兰文化赋予兰以君子品格;日本江户时代的”富贵兰”(风兰)收藏与近代欧洲的兰花狂热(1830–1900 年的 Orchidelirium)、印尼与菲律宾土著对特定附生兰的仪式性保留,共同指向一个事实:在每一个有兰花的文化里,它都不属于日用,而属于非日用。这与大多数植物由”实用性”进入文化的路径恰好相反——兰花是因”无用”而被珍视的。
仰头看冠层,看树皮缝里的那丛叶
地点与时间:西双版纳的蜘蛛兰属野生个体多见于海拔 500–1500 米的季节雨林、山地雨林中,附生在大径级乔木(胸径多在 40 厘米以上)的粗枝与分叉处;观察最佳时段为花期(4 月至 8 月),花期之外以带状肉质叶、长而发达的气生根为识别特征;一天中以上午十点前光线斜入冠层的时段最易发现——花被的反光信号在侧光下最强。观察要领:仰头看大树的横枝,蜘蛛兰的叶片成两列排列,从一侧看是明显的”扁扇形”,与万代兰相似但在花期后仍能根据叶片基部宿存的花葶残迹辨认。
观察礼仪:只远观、只拍照、不触碰、不折断气生根(气生根外层的根被组织极脆弱,受损后易感染真菌)。严格禁止采挖:蜘蛛兰属所有种在中国受法律保护,属 CITES 附录 II 管制物种,任何野外采集、运输、持有、交易行为均属违法。
据太阳鸟团队在澜归谷及澜沧江流域的长期观察:
- 澜归谷周边的季节雨林样线中,附生兰科植物的记录以石斛属、万代兰族、脆兰属为主,蜘蛛兰属的直接目击在三次科考中仅记录到两次,均为高位冠层(10 米以上)。
- 团队记录到附生兰花期的开放集中出现在 5–7 月的午后雷阵雨前后,高温高湿后的次日花朵最盛,这与传粉果蝇活跃时段吻合。
- 村寨走访中,中老年受访者普遍能回忆起过去山上附生兰的常见程度,而近二三十年野生目击频率明显下降,多位受访者将其归因于大径级宿主树的采伐与非法采集。