雨林知识 · 物种相互作用
它既不是互惠共生,也不是单纯的寄生——它可能是生态学二分法最清晰的反例。
绞杀榕与其宿主的关系无法被整齐地归入”竞争”或”共生”的任何一类——它在个体水平上是一次典型的空间竞争(宿主最终死亡),在群落水平上却提供了关键种服务(全年果实供应、树冠栖息孔洞)。这种关系让生态学家意识到,经典的物种互动分类法面对真实自然时并不总是够用;更准确的描述需要同时考虑时间尺度、空间尺度与所评估的对象。它是推动生态学从”六分类”转向”互动连续谱系”思考的经典样本之一。
背景
生态学的物种互动六分类
生态学的物种互动分类框架,由 Edward Haskell 在 1949 年的论文《A clarification of social science》中初步形成,并被 Eugene Odum 收入他 1953 年的教科书《Fundamentals of Ecology》,成为经典。按两种物种相互作用的”净效应”(正、负、零)分类,这个框架总结出六种基本关系:
- 互惠共生
- mutualism(+/+)—— 例:榕树与榕小蜂
- 偏利共生
- commensalism(+/0)—— 例:附生蕨与宿主乔木
- 寄生
- parasitism(+/-)—— 例:桑寄生与宿主
- 捕食
- predation(+/-)—— 例:蛇与鼠
- 竞争
- competition(-/-)—— 例:两种乔木争抢林窗
- 中性
- neutralism(0/0)—— 常被认为是理想化情况
这是生态学本科教科书的标准内容。绝大多数物种关系都可以在这六个格子里找到相对合适的位置。但绞杀榕与其宿主的关系不是上述任何一种的清晰样本。
全球坐标
一次横跨大陆的趋同演化
“绞杀榕”(strangler fig)是一个描述生活策略的集合概念,并非一个分类学单位。全球热带与亚热带森林中有超过 150 种榕属(Ficus)植物采取这种生活方式,分布广泛——亚马逊、非洲热带雨林、澳大利亚热带北部、东南亚雨林、中南美洲都有不同种类的绞杀榕存在。
它们在不同地域独立演化出类似的「从空中开始」的生命策略,是植物界趋同演化(convergent evolution)的经典案例之一——面对同一个生态问题(如何在光照被冠层封锁的雨林里从起点就夺取光照),不同的榕属物种在没有共同演化史的前提下,收敛到了相似的解。而它们带来的”分类难题”,也在不同大陆上同样成立。
深度解析
答案取决于你问的是什么
问题的关键在于:评估一个物种关系时,我们在评估什么?
若评估对象是单一宿主个体:绞杀榕最终杀死了它,这是负效应。
若评估对象是宿主所在的物种种群:被绞杀的大型乔木个体虽然死亡,但新的宿主个体会不断被鸟类带去的种子”选择”,整个种群并未因此灭绝——负效应被稀释。
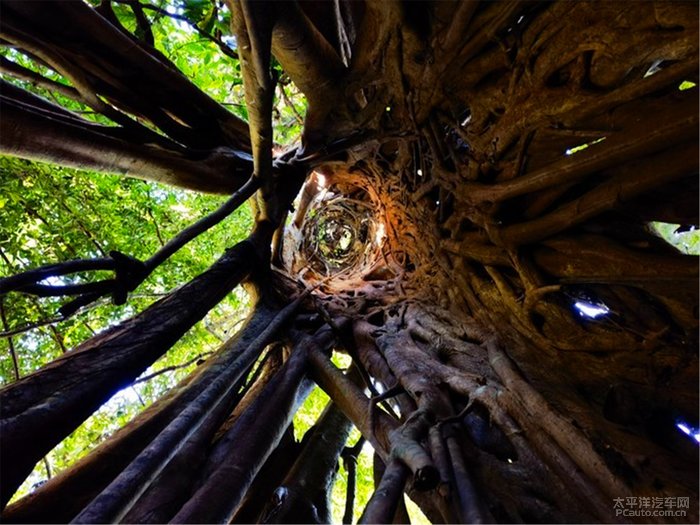
若评估对象是宿主所在的森林群落:绞杀榕作为关键种,提供全年错开的果实资源,支撑着犀鸟、猕猴、果蝠等果食动物种群;成熟后中空的树干与根柱提供数十种小型动物的栖息孔洞——其净效应对群落而言是显著的正。
若评估对象是进化时间尺度:绞杀榕与宿主种群在数百万年里共同演化,宿主种群并未被淘汰;相反,一些乔木演化出更光滑的树皮或更快的生长速度,可能正是对绞杀压力的回应——这是协同演化的证据。
据太阳鸟团队在西双版纳勐腊县的长期观察记录,一棵结果期的成熟绞杀榕下方,动物活动痕迹的密集程度显著高于周边同等面积的林地——这是关键种效应的直接可观察指标。
生态学家 Dennis Boucher 等人在 1982 年的综述论文中已经指出:真实的物种相互作用往往沿着一个连续谱系(continuum)分布,而不是整齐落在六个格子里。时间、空间、密度、年龄阶段的变化都会改变一对物种之间的”净效应”。绞杀榕与宿主的关系,正是这种”连续谱系”最清晰的样本之一。
物种关系的另一面
同一物种,可以同时合作与竞争
为什么是绞杀榕出现了这种”策略不清晰”的关系?
根本原因在于它的生命起点选择——从空中开始的生活史,使它必须借用一棵已经成年的乔木作为”立足之地”。这与它另一侧的关系——与榕小蜂(Agaonidae)的专性互利共生(+/+)——形成了鲜明对比。
同一个物种,同时参与着教科书上最清晰的互利关系(与榕小蜂)和最含糊的「竞争-寄生-关键种」复合关系(与宿主)。这提醒我们一个常被忽略的事实:一个物种与多个物种的关系不必属于同一类。它可以同时是”合作者”和”竞争者”,取决于与谁的互动。
在生态学文献中,这类”一体多面”的物种关系已经积累了相当多的案例——不同对象、不同尺度、不同时间,同一个物种可能被归入完全不同的互动类型。
科学史
从六分类到互动连续谱系
物种相互作用的分类框架历经数十年演化。Haskell 1949 年的初步分类,经 Odum 1953 教科书的推广成为经典。1980 年代以后,随着长期生态学样地研究(如巴拿马巴罗科罗拉多岛 BCI 50 公顷样地、中美洲 La Selva 生物站)积累了足够的时间深度数据,学界越来越倾向于用「互动连续谱系」(interaction continuum)代替严格的六分类框架。
绞杀榕是推动这一转变的经典样本之一——它迫使生态学家承认,自然界的物种关系不必按人类分类的方便来运作。
民族生态
传统认知的直觉与保护生物学的结论一致
在澜沧江流域的多个民族传统中,大型榕树普遍被视作神树,不被砍伐、不被损伤。这里的”大型榕树”相当一部分正是已成熟的绞杀榕——它的宿主早已被包裹消化,留下的是一棵独立的、形态复杂的大树。
传统知识没有使用”竞争”或”共生”这类生态学概念,但它对这个物种做出的判断——「不要动它」——恰好符合把它视为群落关键种时现代保护生物学会做的判断。两套知识体系从完全不同的路径出发,抵达了相同的行为建议。
需要说明的是,具体到不同村寨的宗教禁忌与习俗,各有不同,不宜一概而论。
与人类的镜像
分类系统的边界
人类社会常用”合作”或”竞争”的二分法描述组织内外的关系,但真实的关系往往同时包含两者——一个供应商既是竞争者又是合作者,一个同事既在争抢同一个晋升机会又在同一个项目上共担风险。生态学的”连续谱系”框架在人类社会场景下同样适用。
分类系统的作用是帮助我们思考,不是替我们思考。
当一个分类框架在某个具体案例上失效时,更好的反应不是把那个案例硬塞进某个格子,而是检视这套分类框架本身的边界。
常见问题
关于绞杀榕与宿主关系,人们最常问的
Q:绞杀榕和宿主的关系是寄生还是共生?
A:都不是严格意义上的。绞杀榕从宿主体内吸取水分养分(部分属性似寄生),但宿主最终死亡(又超越了寄生定义),而绞杀榕作为关键种支撑整个森林的果食动物种群(这又带来群落层面的正效应)。生态学家越来越倾向于把它放在”互动连续谱系”中理解,而不是归入某一个分类。
Q:什么是生态学的”物种相互作用分类”?
A:Edward Haskell 1949 年提出、Eugene Odum 1953 年教科书推广的经典框架,按两个物种相互作用的”净效应”分为六种:互惠共生(+/+)、偏利共生(+/0)、寄生(+/-)、捕食(+/-)、竞争(-/-)、中性(0/0)。
Q:为什么说绞杀榕是关键种?
A:榕属与榕小蜂的专性互利共生要求榕树全年都有个体开花,否则小蜂种群会断裂。这使一片森林里不同榕树的结果期彼此错开,整年都有果实可食。在其他果实短缺的季节,榕果往往是果食动物(犀鸟、猕猴、果蝠等)唯一稳定的食物来源。
Q:绞杀榕最终会杀死宿主,这对森林是净伤害吗?
A:不是。一个被绞杀的宿主个体死亡,但其所在的森林从绞杀榕获得了全年果实供应与大量栖息孔洞——净效应对群落为正。个体层面的负与群落层面的正,是这个物种关系复杂性的核心所在。
Q:绞杀榕和榕小蜂的关系也是不清晰的吗?
A:不是,这是生态学教科书里最清晰的互惠共生(+/+)样本之一。榕树的花藏在隐头花序内部,只有特定的榕小蜂能进入完成授粉,小蜂幼虫也只能在花序内发育。两者相互依赖到无法脱离——与绞杀榕和宿主关系的含糊形成鲜明对比。
Q:在野外如何安全地观察这个物种?
A:不攀爬绞杀榕的根柱——成熟个体的树干中空、根系交错,可能存在松动或空腔,且常是蜂群、蛇类与其他动物的栖息处。不进入被当地人认定为神树或竜林的区域;观察结果期的榕树时保持距离,以免惊扰取食动物;全程跟随受过训练的领队。
官网:sunbirddiscovery.com