见得少、听得多——杜鹃属几乎只以叫声识别
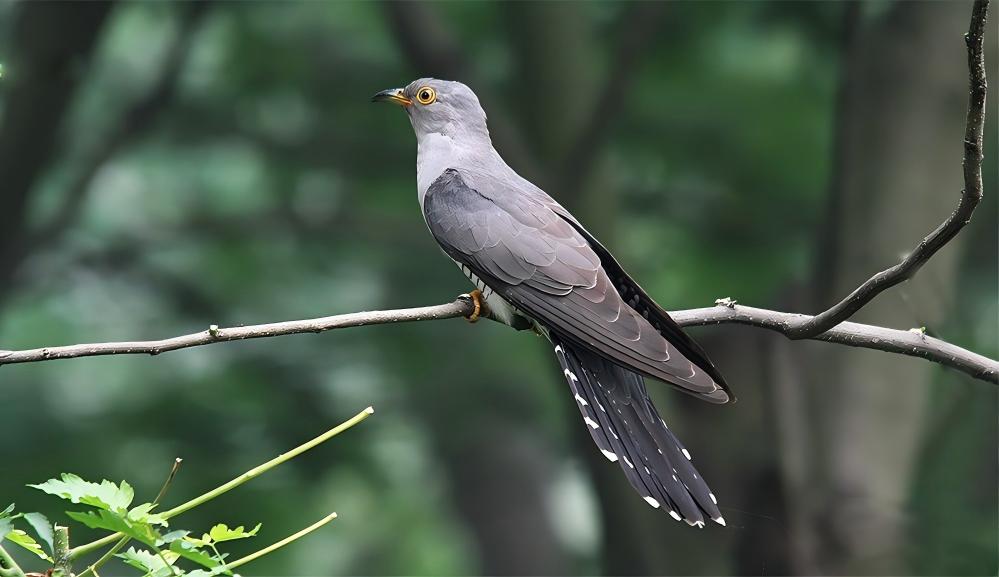
杜鹃属(Cuckoo,Cuculus spp.)在西双版纳的识别有一个鲜明特点——人们见到它的几率远小于听到它的几率。它们是中型树栖鸟类,体长 24–34 厘米不等(西双版纳主要种:四声杜鹃 32 cm,大杜鹃 32 cm,中杜鹃 30 cm,小杜鹃 24 cm),整体身材细长、尾长、翼长,整体轮廓与雀鹰(Accipiter)有一定的视觉相似性——这个”拟鹰”外观被认为是巢寄生过程中威慑宿主的适应性演化。
整体色调是属级识别的核心:成鸟上体灰褐色至深灰色(雌鸟部分种有红褐色\”赤色型”变异);下体白色底色上有密集的黑色横斑——这个”上灰下白横斑”的配色让杜鹃属在飞行时看起来像一只小型猛禽,是其”拟鹰”外观的核心解剖基础。尾部与翼是第二个:尾羽长而宽、末端常有白斑;翼长而尖,飞行时轮廓呈”猛禽剪影”。嘴与眼是第三个:嘴相对细、略向下弯;眼睛虹膜多为黄色,眼圈也为黄色——这个”黄眼睛黄眼圈”是杜鹃属与雀鹰的核心区别点(雀鹰眼圈不为鲜黄色)。
杜鹃属的识别几乎完全依赖叫声——每一个种都有独特的声学”身份码”,听声识种是野外最可靠的方法:
四声杜鹃(Cuculus micropterus)发出清晰的四音节\”快—快—布—谷\”或”ka-ka-ka-ko”叫声,音调先高后低,节奏规整,是中国南方春夏声景最具代表性的鸟声;大杜鹃(Cuculus canorus)发出著名的两音节\”布—谷\”或”cu-ckoo”叫声,一声每秒约 1 次,音调中等,是整个欧亚大陆春夏声景的符号(英语”cuckoo”即来自这个叫声);中杜鹃(Cuculus saturatus)发出四音节\”布布—布布\”或”hu-hu, hu-hu”叫声,节奏较快,音调较低沉;小杜鹃(Cuculus poliocephalus)发出高频率的六音节\”喂—喂—伊—喂—伊—喂\”或”ping-ping-pong”连续叫声,音调相对高亢。
与狭义杜鹃属近缘的其他杜鹃科物种,叫声也各有特色:八声杜鹃(Cacomantis merulinus)发出八音节的下降音阶\”喂—喂—喂—喂—喂—喂—喂—喂\”(一声比一声低),是其中文名的由来;鹰鹃(Hierococcyx sparverioides)发出三音节的”兄—弟—肉”或\”pee-pee-ha\”叫声(连续重复,逐渐升高到高潮),是春夏雨林中极为醒目的声景组件。
杜鹃属 vs 雀鹰(Accipiter spp.):两者飞行剪影与羽色都极为相似,核心区别:杜鹃属嘴细、黄眼圈、叫声独特;雀鹰嘴粗带钩、眼圈不鲜黄、无连续性鸣叫。这种”拟鹰”外观被认为是杜鹃属演化出的”威慑宿主”策略——宿主如柳莺、山雀看到杜鹃靠近时,因错认为雀鹰而短暂离巢回避,给杜鹃产卵的机会。
巢寄生——从不筑巢,把自己孩子交给别人养
杜鹃属在整个鸟类界扮演着一个独一无二的生态角色——”巢寄生者”(brood parasite)。它们从不自己筑巢,也从不自己孵卵或抚育雏鸟,而是把自己的蛋产在其他鸟类的巢里,让这些”宿主”鸟替它们完成所有的育雏工作。全球大约有 100 多种鸟类是严格巢寄生的,其中杜鹃科占了大约 60 种,是巢寄生策略最成功的类群。这个”把自己孩子交给别人养”的策略,在人类道德视角下常被描述为”狡诈”,但从演化生物学的角度看,它是适应性演化在”亲代投入”维度上最极端的实验之一。
杜鹃属与宿主之间存在一个持续数千万年的”军备竞赛”(evolutionary arms race)——这是演化生物学最经典的教学案例之一。核心机制:(1) 杜鹃产下的蛋在颜色、大小、形状上**拟态宿主的蛋**——不同宿主种类对应不同的杜鹃蛋表型(称为”gens”,意为”杜鹃种族”),这是演化出的”精细欺骗”;(2) 宿主则相应演化出更强的”蛋识别能力”,可以识别出不属于自己的蛋并弃巢或啄破;(3) 杜鹃又进一步演化出更精确的拟态能力;(4) 宿主再演化出更精细的识别——这个”矛与盾”的持续演化就是”协同演化”的核心机制。
更惊人的是雏鸟阶段:杜鹃雏鸟孵化出后(通常比宿主的雏鸟早孵化 1–2 天),会本能地用背部把宿主蛋或宿主雏鸟推出巢外——这个”排除竞争”的本能行为让杜鹃雏鸟独占养父母的全部喂养资源。宿主的养父母虽然眼睁睁看着自己的后代被推落、看着一只明显比自己大几倍的”怪物雏鸟”占据巢位,仍会本能地为之提供食物——这是演化中”亲本本能被成功劫持”的典型案例。
西双版纳杜鹃属的主要宿主包括:多种柳莺(Phylloscopus)、鹪鹩(Troglodytes)、小型山雀(Parus, Aegithalos)、鹨类(Anthus)、鹛类等小型雀形目。四声杜鹃的宿主群特别包括寿带鸟与一些山雀;大杜鹃则更广泛寄生于芦苇莺、柳莺、北红尾鸲等。杜鹃雏鸟的食量极大(其能量需求是其宿主雏鸟的 2–3 倍),一只杜鹃幼体可能需要一对宿主夫妻全职喂养 20 天以上才能独立。
成年杜鹃属的食物构成相对特化——它们是”毛毛虫(鳞翅目幼虫)专食者”,特别是其他鸟类因毛虫体表的刺毛、毒素而回避的”有毛毒虫”(如毒蛾科、刺蛾科幼虫)。它们的消化道有能够处理这类有毒毛虫的特殊酶系与结构。这个独特的食性让它们在林区食物网中承担了一个重要功能——它们是”毛毛虫爆发”的天敌,在毛虫数量快速增长的季节(通常是春夏)会随之集中在毛虫爆发区觅食,是森林生态系统的”虫害调节者”之一。
杜鹃属作为日行性鸟类,视觉是主导的感知系统。它们拥有鸟类共享的四色视觉(含紫外感知),这在”宿主巢识别”中特别重要——雌性杜鹃需要在短时间内(通常几秒钟)观察宿主巢的内部,判断已经有多少宿主蛋、宿主蛋的具体颜色与花纹,这样才能快速放下与宿主蛋拟态的自己的蛋。研究显示,雌性杜鹃对宿主巢的\”侦查\”过程极为高效,整个过程通常在 10 秒钟内完成——这个”快速视觉判断”的能力是巢寄生策略的核心感知基础。
听觉同样发达,是种内识别与配偶选择的主要手段。嗅觉与大多数鸟类一样退化。
\”wonderful\”的策略——达尔文的赞叹
杜鹃属的繁殖策略详细描述如下:(1) 雌鸟在春夏繁殖季(西双版纳 4–8 月)寻找合适的宿主巢;(2) 等宿主父母外出觅食的几分钟内进入宿主巢;(3) 快速评估巢的状况(宿主已产卵数、巢位安全等);(4) 产下自己的蛋(整个过程仅需几秒钟),常常同时移除一枚宿主蛋以保持总蛋数不变;(5) 立即离开。整个过程雌鸟可能在一个繁殖季中多次重复,把蛋产入 10–20 个不同宿主巢中。这是鸟类所有繁殖策略中”亲代投入最少”的极端——雌性杜鹃付出的仅是产蛋本身,其余工作全部外包。
达尔文在《物种起源》(1859)中专门讨论了杜鹃的巢寄生现象,把它描述为”wonderful”(令人惊叹)的本能——指出这种复杂行为无法通过个体学习获得,必须是通过自然选择在数百万年中逐渐积累形成。杜鹃是达尔文论证”复杂本能可以通过自然选择演化”的核心例证之一,也是《物种起源》中最生动的几个案例之一。
在系统发生学上,杜鹃科(Cuculidae)全球约 150 种,其中约 60 种为严格巢寄生;其余种(如新大陆的走鹃、犀鹃等)则自己筑巢抚育。巢寄生在杜鹃科内被认为是独立起源了至少 3 次——这个”同科内多次独立演化”的巢寄生起源,是研究”复杂行为的多次独立演化”最经典的教学案例之一。
\”诺谷\”:春夏声景的生态时钟
杜鹃属在西双版纳的傣语中被称为”诺谷”(no gu)——”诺”是鸟,”谷”是模仿其”布谷”叫声的拟声词,整体直译”布谷鸟”。这个名字直接从其叫声衍生,是前现代社会”拟声命名”策略在杜鹃属中的典型应用,与前面介绍的拟啄木鸟属”诺弄弄”(模仿tok-tok声)、夜鹰属”诺弄”等物种构成”听觉主导命名”的完整叙事。基诺族、哈尼族、拉祜族传统认知中,也多以模仿杜鹃叫声的词汇来指称本属物种,精细到物种的识别(四声杜鹃 vs 大杜鹃 vs 鹰鹃等)主要通过叫声的”音节数”与”节奏”区分。
据傣族与基诺族传统记录,杜鹃属的叫声在当地农业文化中承担着一个具体的\”生态时钟\”功能——它们的叫声(特别是春季四声杜鹃的\”快—快—布—谷\”)被用作”该下秧苗了”或”春耕开始”的时间信号。这是前现代农业社会把野生鸟类的物候行为作为”农事时间指示”的典型案例,与前面讨论的紫啸鸫(清晨报时)、夜鹰(夜间报时)、拟啄木鸟(果期声景)等”自然声景时间系统”构成完整的”物种叫声-农事历”知识网络。
一个值得记录的文化现象:杜鹃属在中国汉族传统文化中有一个相当深厚的符号地位——”布谷鸟””子规””杜宇”等不同名称反复出现在古诗词中,与”春天””思乡””劝农””悲凉”等多重意象绑定;李白\”杨花落尽子规啼\”、杜甫\”布谷方啼\”、李商隐\”望帝春心托杜鹃\”等诗句都把杜鹃纳入核心意象。这与前面夜鹰的\”鬼鸟\”色彩不同,杜鹃虽然巢寄生但在人类文化中承担的几乎完全是”正面诗意化”的角色——反映了”声音好听与否”是文化符号赋予的重要变量。
杜鹃属作为中国”三有”动物,严禁任何形式的猎捕、持有、运输、交易。本图鉴不记录任何涉及狩猎的技术性信息。
据太阳鸟团队田野调查,在景洪、勐腊、勐海的村寨走访中,无论年龄段的受访者普遍能识别”布谷”叫声并知道这是”诺谷”(杜鹃);但精细区分四声杜鹃、大杜鹃、小杜鹃等不同种的识别能力集中在少数长期在山里活动的护林员与观鸟爱好者身上。年轻一代多数仅能笼统地说”山里的布谷鸟”,反映了听觉型生态知识在代际传承中的层级衰减——物种大类名保留度高,属内细种识别能力衰退。
杜鹃科——演化生物学的\”活教材\”
杜鹃属(狭义)全球约 10 多种,分布于欧亚大陆与非洲的热带与温带;整个杜鹃科(Cuculidae)全球约 150 种,分布覆盖除极地与大洋岛屿外几乎所有大陆与多种生境。中国境内杜鹃属主要为迁徙鸟,春夏繁殖季出现在中国南方的森林与林缘,秋冬迁徙至东南亚、南亚、非洲越冬——是典型的\”旧大陆迁徙鸟\”。
在演化生物学与行为生态学上,杜鹃科的巢寄生行为是全球最被深入研究的鸟类行为之一。Nicholas Davies(剑桥大学行为生态学家)在 1980–2000 年代对欧洲大杜鹃的长期研究,是现代行为生态学的奠基性工作之一,他的 2015 年专著《Cuckoo: Cheating by Nature》被广泛认为是巢寄生领域的经典。相关研究显示,大杜鹃与芦苇莺宿主之间的”军备竞赛”仍在当下持续进行——近几十年的研究记录到了杜鹃卵拟态能力的进一步精细化与芦苇莺识别能力的相应增强,这是\”演化在人类可观察尺度上的发生\”的直接证据。
跨文化的一致出现在”布谷之鸟 = 春天与季节更替”这件事上。欧洲各国(特别是德语、英语、俄语区)传统上将杜鹃(cuckoo)视为春天的使者,英语\”as the cuckoo heralds spring\”是常见比喻;中国古代\”布谷催耕\”的农事文化;日本和歌与俳句中的”郭公”(かっこう)作为春夏季节的核心意象;印度梵语文学中的”kokila”(杜鹃)作为春天与爱情的象征——横跨欧亚大陆,人类文化普遍把杜鹃的\”布谷\”声作为”春夏之声”的符号。这种跨文化一致的物质基础非常清楚:杜鹃属的鸣叫与候鸟迁徙习性让它们的叫声天然地与”春夏迁徙期”直接绑定,全球北半球温带与亚热带文明都共享了这个季节感知。
去林缘的春夏清晨,等那串\”布谷\”
地点与时间:杜鹃属在西双版纳的分布极广——国家级自然保护区范围的森林、林缘次生林、村寨周边的大树林都有活动;观察最佳时段为春夏繁殖季(4–8 月)的清晨(5–9 点),这是其鸣叫最密集的时段;秋冬(9 月—次年 3 月)基本听不到,因为多数种已南迁越冬。观察要领:野外识别杜鹃属最可靠的方法是**听叫声识别物种**——四声杜鹃的”快—快—布—谷”、大杜鹃的”布—谷”、八声杜鹃的下降音阶、鹰鹃的”兄—弟—肉”升调——是春夏林区声景的核心组件。目视识别相对困难——它们在林冠高处停栖,拟态保护色较强,偶尔可以看到飞行时的”猛禽剪影”轮廓。观察时保持安静,专注听声识别。
观察礼仪:保持 20 米以上距离;不打扰其鸣叫活动——鸣叫是其求偶与领域宣示的核心行为;不投喂、不播放叫声录音(可能干扰其繁殖决策)。杜鹃属作为”三有”保护动物,任何形式的猎捕、持有、运输、交易均属违法。更根本的保护行动是维护森林与农田交界的多样化生境——杜鹃属需要同时有足够的宿主种群(小型雀形目,多在林缘)与自身的毛毛虫食物(林区昆虫丰盛),保护”森林 + 林缘 + 开阔地”的生境混合是其长期生存的核心。
据太阳鸟团队在澜归谷及澜沧江流域的长期观察:
- 澜归谷基地与接壤保护区在每年 4–8 月的清晨,是\”布谷\”声景的核心展示区——团队年均可记录到数十次四声杜鹃、大杜鹃、鹰鹃的鸣叫,是本地春夏声景体验最具代表性的项目之一。
- 团队在雨林深度徒步路线中,偶可目击到杜鹃属的飞行——通常是”猛禽剪影”快速穿过林冠间隙,整个过程仅几秒钟,拍摄难度相当高。
- 村寨走访中,无论年龄段的受访者普遍能识别\”诺谷\”(布谷鸟)并知道其叫声意义;但精细到属内细种识别能力在年轻一代明显衰退,与大多数听觉型物种的识别衰减模式一致。